Durante mucho tiempo, la genética se explicó a partir de una idea relativamente sencilla: los genes contienen la información necesaria para determinar las características de un organismo. Sin embargo, hoy sabemos que tener un determinado gen no significa necesariamente que ese gen vaya a estar activo. La expresión de un fenotipo depende no solo de la secuencia del ADN, sino también de un conjunto de mecanismos regulatorios que determinan cuándo, dónde y cuánto se expresa cada gen.
En este sentido, podemos pensar al genoma como un gran conjunto de instrucciones, pero a la regulación epigenética como el sistema que determina cuáles de esas instrucciones pueden ser utilizadas en cada célula y en cada momento. Estos mecanismos actúan “por encima” de la secuencia de ADN y permiten modificar su actividad sin cambiar la información contenida en ella.
La regulación epigenética permite a las plantas responder a señales del entorno y del desarrollo cambiando qué genes se expresan, además de hacer posible que estos cambios se mantengan y transmitan. Entre los principales mecanismos epigenéticos se encuentran la estructura y organización de la cromatina, las modificaciones de las histonas, la metilación del ADN y la acción de ARN no codificantes. Por ejemplo, la metilación de determinadas citosinas puede contribuir al silenciamiento de genes o de elementos transponibles, mientras que ciertas modificaciones de las histonas pueden favorecer o restringir el acceso de la maquinaria celular al ADN. De esta manera, la regulación de la cromatina influye directamente sobre la posibilidad de que un gen sea transcripto.
La epigenética estudia precisamente estos mecanismos que regulan la actividad del genoma sin modificar su secuencia de ADN. La epigenómica, en cambio, amplía esta perspectiva y analiza estas modificaciones a escala de todo el genoma, permitiendo estudiar dónde se encuentran, cómo se distribuyen y cómo interactúan entre sí. Así, la epigenómica no se limita a preguntar si un gen está metilado o no, sino que busca comprender cómo se organiza globalmente el paisaje regulatorio del genoma y cómo este cambia entre tejidos, condiciones ambientales o estados de desarrollo.
La cromatina es la estructura que organiza el material genético dentro del núcleo celular. Su unidad básica de organización es el nucleosoma, constituido por aproximadamente 147 pares de bases de ADN enrollados alrededor de un octámero de histonas, formado por dos copias de H2A, H2B, H3 y H4. Las histonas son proteínas pequeñas y ricas en aminoácidos con carga positiva, principalmente lisina (K) y arginina (R), que interactúan con el ADN, de carga negativa debido a sus grupos fosfato.
La estructura de la cromatina puede adquirir un estado más abierto y accesible (eucromatina) o más compacto y represivo (heterocromatina), según la interacción demúltiples mecanismos epigenéticos, tales como el posicionamiento de los nucleosomas, las modificaciones de histonas, la metilación del ADN y los mecanismos mediados por RNA.
Sobre el posicionamiento de los nucleosomas, existen proteínas como DDM1 (DECREASED IN DNA METHYLATION 1) que actúan como remodeladoras de la cromatina, modificando la organización de los nucleosomas y facilitando el acceso de enzimas ADN metiltransferasas. En condiciones normales, DDM1 contribuye al mantenimiento de la organización de la cromatina, particularmente en regiones heterocromáticas enriquecidas en elementos transponibles (TEs), facilitando el acceso de las maquinarias responsables de mantener los patrones adecuados de metilación del ADN y, de este modo, el silenciamiento de los TEs y la estabilidad genómica. Volveremos a hablar sobre DDM1 más adelante.
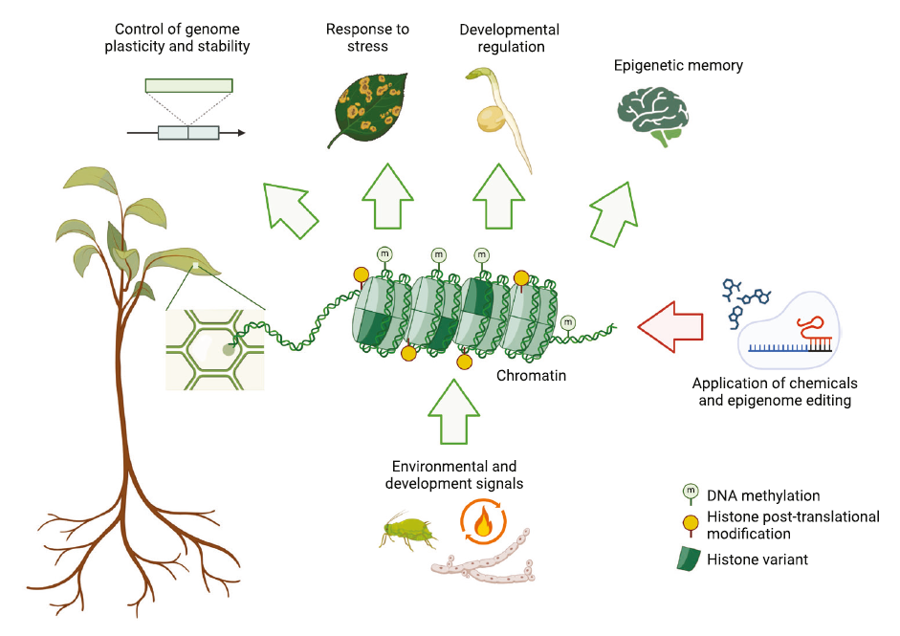
Las modificaciones de histonas incluyen metilación, acetilación y fosforilación. Estas modificaciones pueden alterar las propiedades de la cromatina y actuar como señales para el reclutamiento de proteínas reguladoras. Algunas se asocian con estados activos, como H3K4me3, mientras que otras, como H3K9me2 y H3K27me3, se relacionan con estados represivos.
La metilación del ADN es la incorporación de un grupo metilo a una citosina (C) del ADN y contribuye al silenciamiento de elementos transponibles (TE). Los TE son secuencias de ADN capaces de movilizarse o generar nuevas copias dentro del genoma. Si bien su actividad puede alterar genes, modificar su regulación o generar inestabilidad genómica, también constituyen una fuente de variación genética y, en algunos casos, adquirir nuevas funciones regulatorias. Por ello, las plantas no los eliminan, sino que utilizan mecanismos epigenéticos que limitan su actividad. La metilación puede interactuar con las modificaciones de histonas y con proteínas que reconocen estas marcas, generando un estado de cromatina estable y menos accesible.
En plantas, la metilación del ADN se produce en los contextos CG, CHG y CHH, donde H representa cualquier nucleótido excepto guanina. La enzima MET1 está principalmente asociada con el mantenimiento de la metilación en sitios CG, mientras que CMT3 participa fundamentalmente en la metilación CHG.
CMT2 desempeña un papel importante en el establecimiento y mantenimiento de la metilación CHH, también denominada metilación asimétrica, particularmente en regiones heterocromáticas enriquecidas en H3K9me2 y asociadas a TE largos. Por otro lado, la vía RdDM contribuye especialmente a la metilación CHH en regiones más accesibles, como TE pequeños y los extremos de TE largos. En la vía RdDM canónica, pequeños ARN interferentes (siRNA) de 24 nucleótidos, generados a partir de ARN producido por la ARN polimerasa IV y procesado por RDR2 y DCL3, guían a complejos que finalmente reclutan la metiltransferasa DRM2 hacia secuencias específicas. De este modo, CMT2 y RdDM constituyen dos vías parcialmente diferenciadas que contribuyen a establecer y mantener la metilación CHH en distintos contextos de la cromatina.
Un trabajo reciente publicado en la revista The Plant Cell (Cao et al, 2026) aporta nuevas evidencias sobre el funcionamiento coordinado de los mecanismos epigenéticos. Los investigadores observaron que la pérdida de función de DDM1 en soja altera la conformación de la cromatina, que adquiere un estado más homogéneo: la heterocromatina se relaja y la eucromatina se consensa. El trabajo muestra que la organización de la cromatina no solo influye en la metilación del ADN, sino también en qué vías moleculares participan en ella y en qué regiones del genoma actúan. Para profundizar, podés leer la reseña How chromatin changes shift CHH methylation pathways in soybean, publicada en Plantae.